Представьте стадо, где на десять самок один самец. С точки зрения численности такая система работает: один самец способен оплодотворить всех, число детёнышей за сезон ограничено числом беременностей. Значит, производство самцов сверх необходимого — трата ресурсов? Однако естественный отбор у самых разных видов — от оленей до людей — снова и снова приводит не к 1:10, а примерно к 1:1.
Разгадка в том, что отбор не составляет план численности для всей популяции. Он сравнивает наследуемые варианты: родители с одним вариантом оставляют больше внуков, чем с другим. Если самцов мало, каждый выживший самец получает в среднем больше возможностей размножиться. Поэтому родитель, у которого чаще рождаются сыновья, получит больше внуков, чем сосед, производящий дочерей. Сыновей становится больше, их преимущество тает — и исчезает при равенстве. Если редкими окажутся самки, тот же довод работает в обратную сторону. Ответ связан не с тем, сколько самцов достаточно популяции, а с тем, сколько потомков в среднем оставляет особь редкого пола.
Что сделать. Посчитайте в своём классе или семье соотношение мальчиков и девочек. Оно почти наверняка не 1:1 — и это не опровержение, а другой вопрос: закон говорит о больших числах, а в малых работает случай. Об этом — дальше.
Редкий пол оставляет больше потомков. Возьмём популяцию из 60 самок и 40 самцов. Пусть каждая самка оставляет в среднем двух детёнышей: через матерей учтено 120 потомков. Но у тех же 120 есть отцы, и если их 40, на одного самца приходится в среднем три потомка, на одну самку — два. Преимущество редкого пола обратно пропорционально его численности: при 40:60 репродуктивный успех самца в полтора раза выше. Наследуемый вариант, чуть повышающий вероятность рождения сыновей, распространяется; самцов становится больше, преимущество уменьшается и при равенстве исчезает.
40 самцов: по 3 потомка на каждого
60 самок: по 2 потомка на каждую
3 потомка
2 потомка
120 потомков: у каждого один отец и одна мать
40 × 3 = 60 × 2 = 120: редкий пол в среднем даёт больше потомков
Одни и те же потомки поделены между меньшим числом отцов и большим числом матерей: на редкого родителя приходится больше. Схема.
Предположения, стоящие за картиной:
У каждого потомка ровно один отец и одна мать, значит, суммарный вклад всех отцов равен суммарному вкладу всех матерей.
Спаривания идут по всей популяции, а не внутри семьи.
Сын и дочь обходятся родителям одинаково.
Почему полигамия ничего не меняет. Один успешный самец оставляет десятки потомков, многие — ни одного. Полигамия увеличивает разброс успеха между самцами, но не меняет счёта: все детёныши в сумме имеют столько же отцовских вкладов, сколько материнских. Если самцов мало, средний вклад на самца растёт, даже если распределён крайне неравномерно. Вопросы «сколько самцов достаточно для оплодотворения» и «какое соотношение поддерживает отбор» — разные: первый важен животноводу, второй описывает конкуренцию наследуемых стратегий.
Равны затраты, а не числа. Фишер формулировал тоньше: отбор уравнивает совокупные родительские затраты на потомков двух полов — не только гамету, но беременность, выкармливание, охрану. Если сын требует вдвое больше ресурсов, ожидание сдвигается к одному сыну на две дочери: редкий, но дорогой сын должен окупиться. Поэтому правильнее говорить о распределении ресурсов между полами, а 1:1 — частный случай равной стоимости потомков.
Проверьте сами. Бросьте монету четыре раза и запишите, сколько выпало «орлов». Повторите десять серий. Ровно 2:2 выйдет лишь в трети серий, а 4:0 или 0:4 — примерно в каждой восьмой. Так и в семьях: при вероятности ½ на каждого ребёнка четыре ребёнка одного пола — обычное дело, а не сдвиг.
Тот же принцип в других местах. Это отрицательная частотно-зависимая селекция: стратегия выгодна, пока редка. Так же держатся в популяции редкие окраски бабочек, которых птицы ещё не научились узнавать; левши в спорте, к которым соперники не привыкли; и равновесие «ястребов» и «голубей» в теории игр, где агрессия выгодна, пока агрессоров мало.
Формула. Пусть $N_m$ и $N_f$ — число самцов и самок, $R_m$ и $R_f$ — их средний репродуктивный успех. Тогда
$$\frac{R_m}{R_f} = \frac{N_f}{N_m}$$
модель
потому что $N_m R_m = N_f R_f$ — общее число потомков, посчитанное по отцам и по матерям. Иначе говоря, редкий пол выигрывает ровно во столько раз, во сколько он реже, и равновесие — там, где $N_m = N_f$. С затратами: $N_m c_m \approx N_f c_f$, где $c$ — средняя стоимость потомка данного пола; равные числа получаются только при равных стоимостях.
Почему в семье не 1:1. Число мальчиков среди $n$ детей — биномиальная величина с вероятностью ½, и разброс доли
$$\sigma_p = \frac{1}{2\sqrt{n}}$$
модель
то есть при $n = 100$ отклонение около 5 процентных пунктов, при $n = 10\,000$ — 0,5. Иначе говоря, чтобы увидеть настоящий биологический сдвиг в один процент, нужно посчитать десятки тысяч рождений; отдельные семьи, колонии и короткие наблюдения выглядят перекошенными без всякого механизма. В России в 2016–2020 годах при рождении было около 105,9 мальчика на 100 девочек — доля мальчиков 51,4 % вместо 50 %, сдвиг на 1,4 процентного пункта; по той же формуле он выходит за два стандартных отклонения уже примерно на 5000 рождений, а за три — на 11 000; к старшим возрастам он переворачивается из-за мужской смертности, и это не опровержение Фишера, а другая стадия жизни: первичное, вторичное, взрослое и операционное соотношения — разные величины1.
Случайный разброс доли мальчиков сужается как 1/(2√n): около 5 процентных пунктов при 100 детях и 0,5 при 10 000, поэтому российские 105,9 мальчика на 100 девочек различимы только на больших числах. График.
Кто открыл. Дарвин в «Происхождении человека» 1871 года поставил вопрос и отказался от него как от слишком трудного. Ответ дал в 1884 году немецкий врач Карл Дюзинг, и о нём забыли; Рональд Фишер в 1930 году изложил довод в одном абзаце «Генетической теории естественного отбора», связав его с родительскими затратами, — и абзац стал «принципом Фишера». Уильям Гамильтон в 1967 году показал, когда принцип ломается: у паразитических ос и клещей, где братья спариваются с сёстрами в изолированном участке, лишние сыновья конкурируют друг с другом, и матери выгодно рождать почти одних дочерей — «локальная конкуренция за спаривания» объясняет соотношения 1:20 и круче2. В России половую структуру популяций млекопитающих десятилетиями мерили в поле: тридцатилетний мониторинг грызунов в Ильменском заповеднике показал, что в ловушках соотношение гуляет с сезоном, возрастом и способом учёта, а при рождении держится около 1:1, — Оленев и Григоркина назвали наблюдаемое соотношение изменчивым показателем, колеблющимся около средней3.
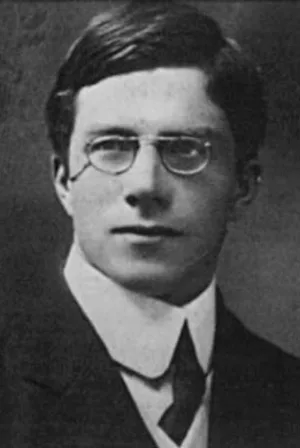
Рональд Фишер в 1912 году — за восемнадцать лет до того, как одним абзацем объяснил, почему мальчиков и девочек рождается поровну. Фото: автор неизвестен, общественное достояние, Wikimedia Commons.
Границы этого рассуждения.
Спаривания должны быть случайными по популяции. При спаривании внутри выводка (осы, клещи) равновесие уходит к самкам.
Стоимость сына и дочери должна быть равной. Иначе уравниваются затраты, а не головы.
Состояние родителей может сдвигать выбор. Гипотеза Трайверса — Уилларда: сильной матери в полигинном виде выгоднее сын, слабой — дочь; проверки у полёвок и оленей дают противоречивые результаты.
Пол не всегда наследуется. У крокодилов и черепах пол задаёт температура гнезда; «эгоистичные» гены и бактерии Wolbachia ломают равную передачу хромосом.
О чём спорят. Насколько родители в самом деле умеют управлять полом потомства? Теория Трайверса — Уилларда предсказывает сдвиги, и десятки работ их находят, но столько же — не находят; у грызунов Назарова и Евсиков связали вторичное соотношение с ресурсами беременной самки, а Шляпникова и Гилева в лабораторной колонии полёвок проверяли ту же гипотезу с иным итогом. Спор о том, есть ли у млекопитающих рычаг, а не только статистика, продолжается3. Отдельная российская линия — гипотеза Вигена Геодакяна об отрицательной обратной связи в определении пола: чем меньше самцов в популяции, тем больше их рождается; Фишеру такой «датчик» не нужен, ему хватает отбора наследуемых отклонений за поколения, и большинство генетиков считает механизм Геодакяна недоказанным. Прямую проверку самого принципа редкого пола дали опыты московской группы на дафниях: при искусственно смещённом соотношении полов репродуктивный успех редкого пола оказался выше, как и предсказано4.
Открытый вопрос. Какой механизм сдвигает долю мальчиков у человека на полтора процентного пункта, до 51,4 %? Фишеровское равновесие объясняет, почему сдвиг мал, но не объясняет, откуда он берётся и почему он один и тот же во всех странах и веках, — гипотез от разной смертности эмбрионов до особенностей сперматозоидов много, доказанной нет.
Герасимов А. А. Территориальная и возрастная дифференциация соотношения полов населения России. Вестник Московского университета, серия 5, География, 2022, № 4. ↩
Fisher R. A. The Genetical Theory of Natural Selection. Oxford: Clarendon Press, 1930, ch. VI; Hamilton W. D. Extraordinary sex ratios. Science 156:477–488, 1967; Edwards A. W. F. Natural selection and the sex ratio: Fisher's sources. American Naturalist 151:564–569, 1998. ↩
Оленев Г. В., Григоркина Е. Б. Динамическое соотношение полов в популяциях цикломорфных млекопитающих. Зоологический журнал 90(1):45–58, 2011; Назарова Г. Г., Евсиков В. И. Зоологический журнал 83(12):1488–1494, 2004; Шляпникова М. С., Гилева Э. А. Экология, 1990, № 5, с. 73–79; Trivers R. L., Willard D. E. Science 179:90–92, 1973. ↩↩
Galimov Y. R., Tukhbatullin A. R., Haag C. R., Tchabovsky A. V. Sex ratio effects on reproductive success of male and female Daphnia. Journal of Evolutionary Biology 34:1817–1826, 2021; Геодакян В. А., Геодакян С. В. Существует ли отрицательная обратная связь в определении пола? Журнал общей биологии 46(2):201–216, 1985; Большаков В. Н., Кубанцев Б. С. Половая структура популяций млекопитающих и её динамика. М.: Наука, 1984. ↩

 Научно-популярный туризм