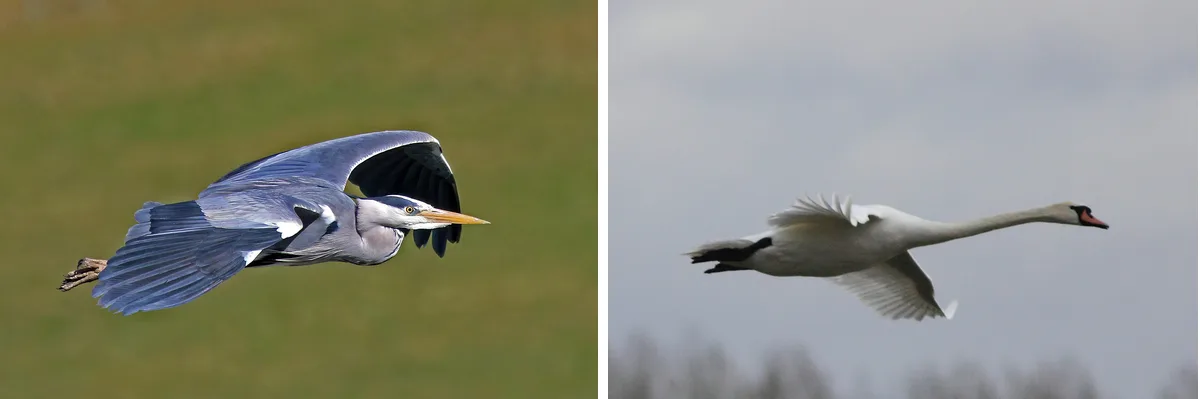
Летящую цаплю легко отличить от лебедя, журавля или аиста даже издалека: голова подтянута к туловищу, шея сложена двойным изгибом, а ноги вытянуты назад. Лебедь, напротив, несёт шею вперёд, стрелой. Шея у обоих длинная. Почему решения противоположны?
Слева — серая цапля в полёте: шея сложена, голова прижата к туловищу, ноги вытянуты назад. Справа — лебедь-шипун: шея вытянута вперёд стрелой. Фото: Charles J. Sharp, CC BY-SA 3.0; Andy Vernon, CC BY 2.0; Wikimedia Commons.
Наивный ответ — «цапля складывает шею, чтобы меньше сопротивляться воздуху» — не работает: тогда и лебедь бы складывал. Настоящая причина в том, для чего шея построена на земле. Шея цапли — охотничий механизм: стоя над водой, она за долю секунды распрямляет S-образную шею и выбрасывает голову к рыбе. Её позвонки в середине специализированы под этот бросок, и в спокойном состоянии шея сама собирается в ту же букву S. Лебедь не бьёт головой: его шея — длинный гибкий подвес, чтобы доставать корм со дна и чистить перья, и в полёте она вдобавок работает амортизатором, гася колебания туловища при каждом взмахе.
Что сделать. Понаблюдайте за цаплей на мелководье: сколько секунд она стоит неподвижно и как коротка вспышка броска. А у лебедя посмотрите, как на взмахах покачивается тело, а голова остаётся на месте.
Шея птицы — не одинаковая цепочка шарниров. У млекопитающих почти всегда семь шейных позвонков, у птиц — от 10 до 26, и верхняя граница у лебедей. Но дело не только в числе: у цаплевых шея разделена на участки с разной подвижностью, и средний отдел сгибается резко, как пружинный замок. Шейный столб цапли — не уменьшенная копия лебединого, это другая конструкция.
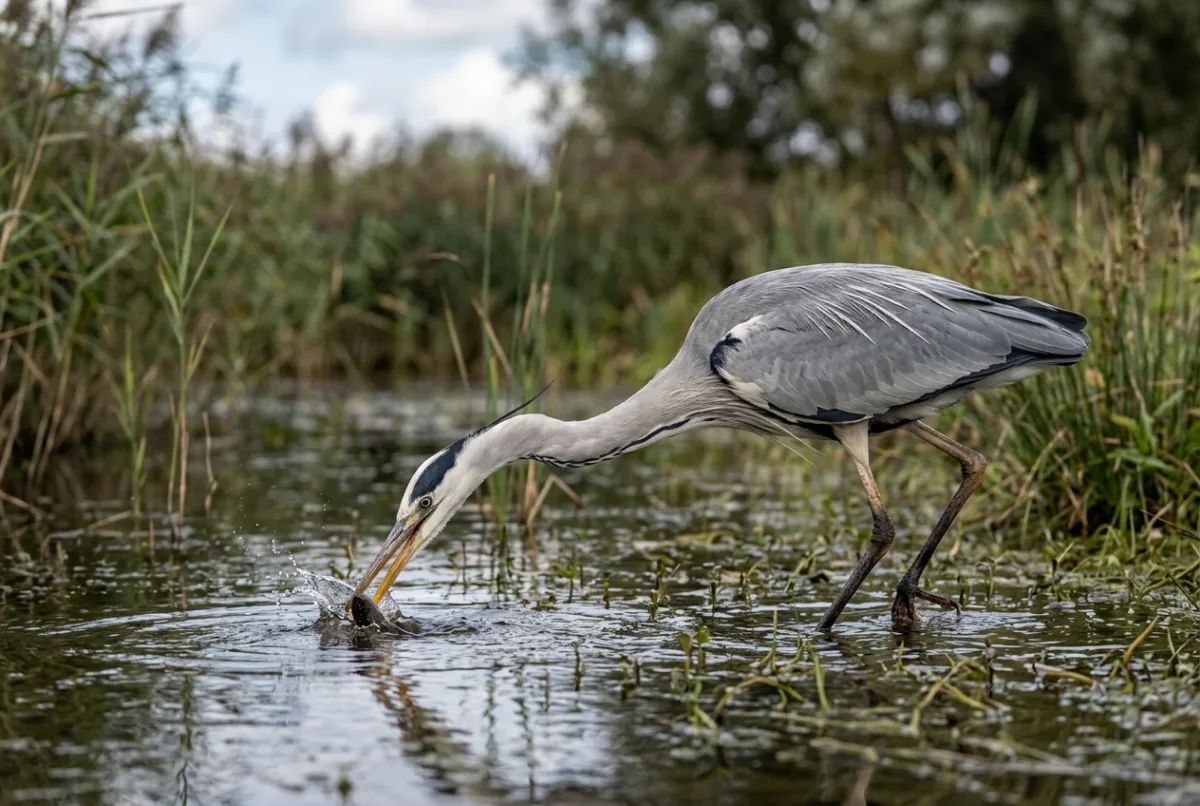
Серая цапля в момент броска: шея резко распрямилась вперёд, и клюв уходит в воду. Иллюстрация.
Цапля: шея, которая превращается в бросок. Перед ударом шея собрана в S. Мышцы у основания разгоняют голову с тяжёлым клювом и тормозят её после удара. Чем дальше голова от туловища, тем больше плечо и тем больше момент, который надо создать и погасить:
момент = масса × ускорение × плечо: при взмахах длинная шея дорога
лебедь: голова далеко — плечо большое
цапля: голова у тела — плечо короткое
Лебедь и цапля в полёте и рычаг под каждым: голова на вытянутой шее — длинное плечо, на сложенной — короткое. Схема.
$$\tau \approx F\,l \approx m\,a\,l$$
модель
Иначе говоря, при каждом взмахе крыльев туловище чуть ускоряется вверх и вниз, и если голова вынесена далеко вперёд, те же ускорения создают на основании шеи больший изгибающий момент. Сложенная шея укорачивает плечо $l$ — и нагрузку, и момент инерции при поворотах. Компактность — это управляемость.
Лебедь: шея как подвес для головы. В установившемся полёте вытянутая шея — не жёсткий шест. Съёмка кликунов над озером показала, что туловище заметно колеблется в такт взмахам, а голова остаётся почти неподвижной: шея гасит колебания, как рессора, и глаза лебедя видят стабильную картину. Лебедю нечего складывать: у него нет охотничьего замка, а голова лёгкая — длинный видимый контур не значит большой доли массы.
Предположения, стоящие за объяснением:
Поза в полёте наследует конструкцию шеи, отобранную для кормления.
Ускорения туловища при взмахах — главный источник нагрузки на шею.
Сопротивление воздуха обоих силуэтов сравнимо и не решает исхода.
А что с сопротивлением воздуха? Сила сопротивления грубо описывается формулой $D = \tfrac12\rho C_D S v^2$. Сложенная шея короче, но делает переднюю часть силуэта толще; вытянутая длиннее, но узка и ориентирована вдоль потока. По одной картинке не скажете, у кого сопротивление меньше — нужны измерения коэффициента формы, и для живых птиц их почти нет. Слова «для аэродинамики» недостаточно.
Не универсальный закон. Журавли, аисты, фламинго летят с вытянутой шеей, хотя кормятся по-разному; пеликаны, как и цапли, прижимают голову к телу. Эволюция не выбирала позу ради силуэта: она меняла шею, которая должна одновременно ловить, глотать, чистить перья и держать голову, — и поза в воздухе досталась в наследство.
Шея как пружина с демпфером. Группа Дэвида Лентинка в 2015 году сняла кликунов скоростной камерой и описала шею как систему масса — пружина — демпфер: туловище задаёт вертикальные колебания с частотой взмаха, а голова отвечает с гораздо меньшей амплитудой. Из записей вышли безразмерные собственная частота и коэффициент затухания, при которых подвес гасит именно частоту взмаха и почти не реагирует на неё1. Тот же принцип инженеры используют в стабилизаторах камер — и статья прямо предлагает лебединую шею как образец подвеса для дрона.
Момент инерции против поворота. Вклад головы в момент инерции птицы растёт как квадрат расстояния от оси:
$$I=\sum m_i r_i^{2}$$
модель
То есть масса, вынесенная вдвое дальше от оси, мешает повороту вчетверо сильнее. Цапля, сложив шею вдвое, уменьшает вклад головы в момент инерции примерно вчетверо и разворачивается на посадке над узкой протокой резче. Современные работы по полёту птиц показывают, что распределение массы и устойчивость меняются самой птицей на лету — складыванием крыла и шеи — и это столь же важно, как аэродинамика2.
Что подтверждено, а что нет. Подтверждены: типичные позы, быстрый бросок цаплевых, необычная региональная морфология их позвонков, амортизация у кликуна. Не измерены: точная экономия энергии у цапли от сложенной шеи и доля упругого «выстрела» в её броске; почему для лебедя вытянутая поза оптимальна энергетически. Нет одного эксперимента, который разложил бы различие двух птиц на слагаемые.
Границы этого рассуждения.
Формула момента — статика. Живая шея — не жёсткий рычаг: мышцы перераспределяют нагрузку, и реальный момент на основании меньше оценки.
Сопротивление не посчитано. Без продувки или расчёта обтекания нельзя сказать, какой силуэт экономнее; аргумент «для аэродинамики» остаётся гипотезой в обе стороны.
Модель Лентинка — для одного вида. У лебедя-шипуна и гуся коэффициенты будут другими; у цапли подвес вообще устроен иначе.
Число позвонков не объясняет позу. У лебедя их до 25, у цапли около 20, но у аиста, летящего с вытянутой шеей, — меньше, чем у цапли.
О чём спорят. Первопричина различия — охота или полёт? Одни считают, что складывание — побочный след охотничьего механизма, а полёт лишь принял готовую конструкцию; другие — что отбор шёл и на полётную позу, и цапли с более компактной шеей выживали чаще на манёврах. Разделить это можно только сравнением многих видов с разной экологией, и обзор 2021 года по эволюции птичьей шеи показывает: связь морфологии шеи с кормлением сильнее, чем с полётом, но не исключает второго3.
Открытый вопрос. Сколько энергии цапля запасает в шее перед броском упруго — в связках и сухожилиях — и сколько выдаёт мышцами в момент удара? У креветки-богомола и лягушки такие «катапульты» измерены, у цапли — нет: скоростная съёмка есть, а датчиков силы на живой птице пока не поставили.
Pete A. E., Kress D., Dimitrov M. A., Lentink D. The role of passive avian head stabilization in flapping flight. Journal of the Royal Society Interface 12:20150508, 2015 (royalsocietypublishing.org). ↩
Harvey C. et al. Birds can transition between stable and unstable states via wing morphing. Nature 603:648–653, 2022. ↩
Marek R. D. et al. Evolutionary versatility of the avian neck. Proc. R. Soc. B 288:20203150, 2021; Kushlan J. A. Feeding behavior of North American herons. The Auk 93:86–94, 1976; Дементьев Г. П., Гладков Н. А. (ред.). Птицы Советского Союза. Т. 2, 4. М., 1951–1952. ↩

 Научно-популярный туризм